今天我们来:有关「sgrna设计网站」为什么sgrna设计要加G,以下4个关于sgrna设计网站的观点希望能帮助到您找到想要的答案。
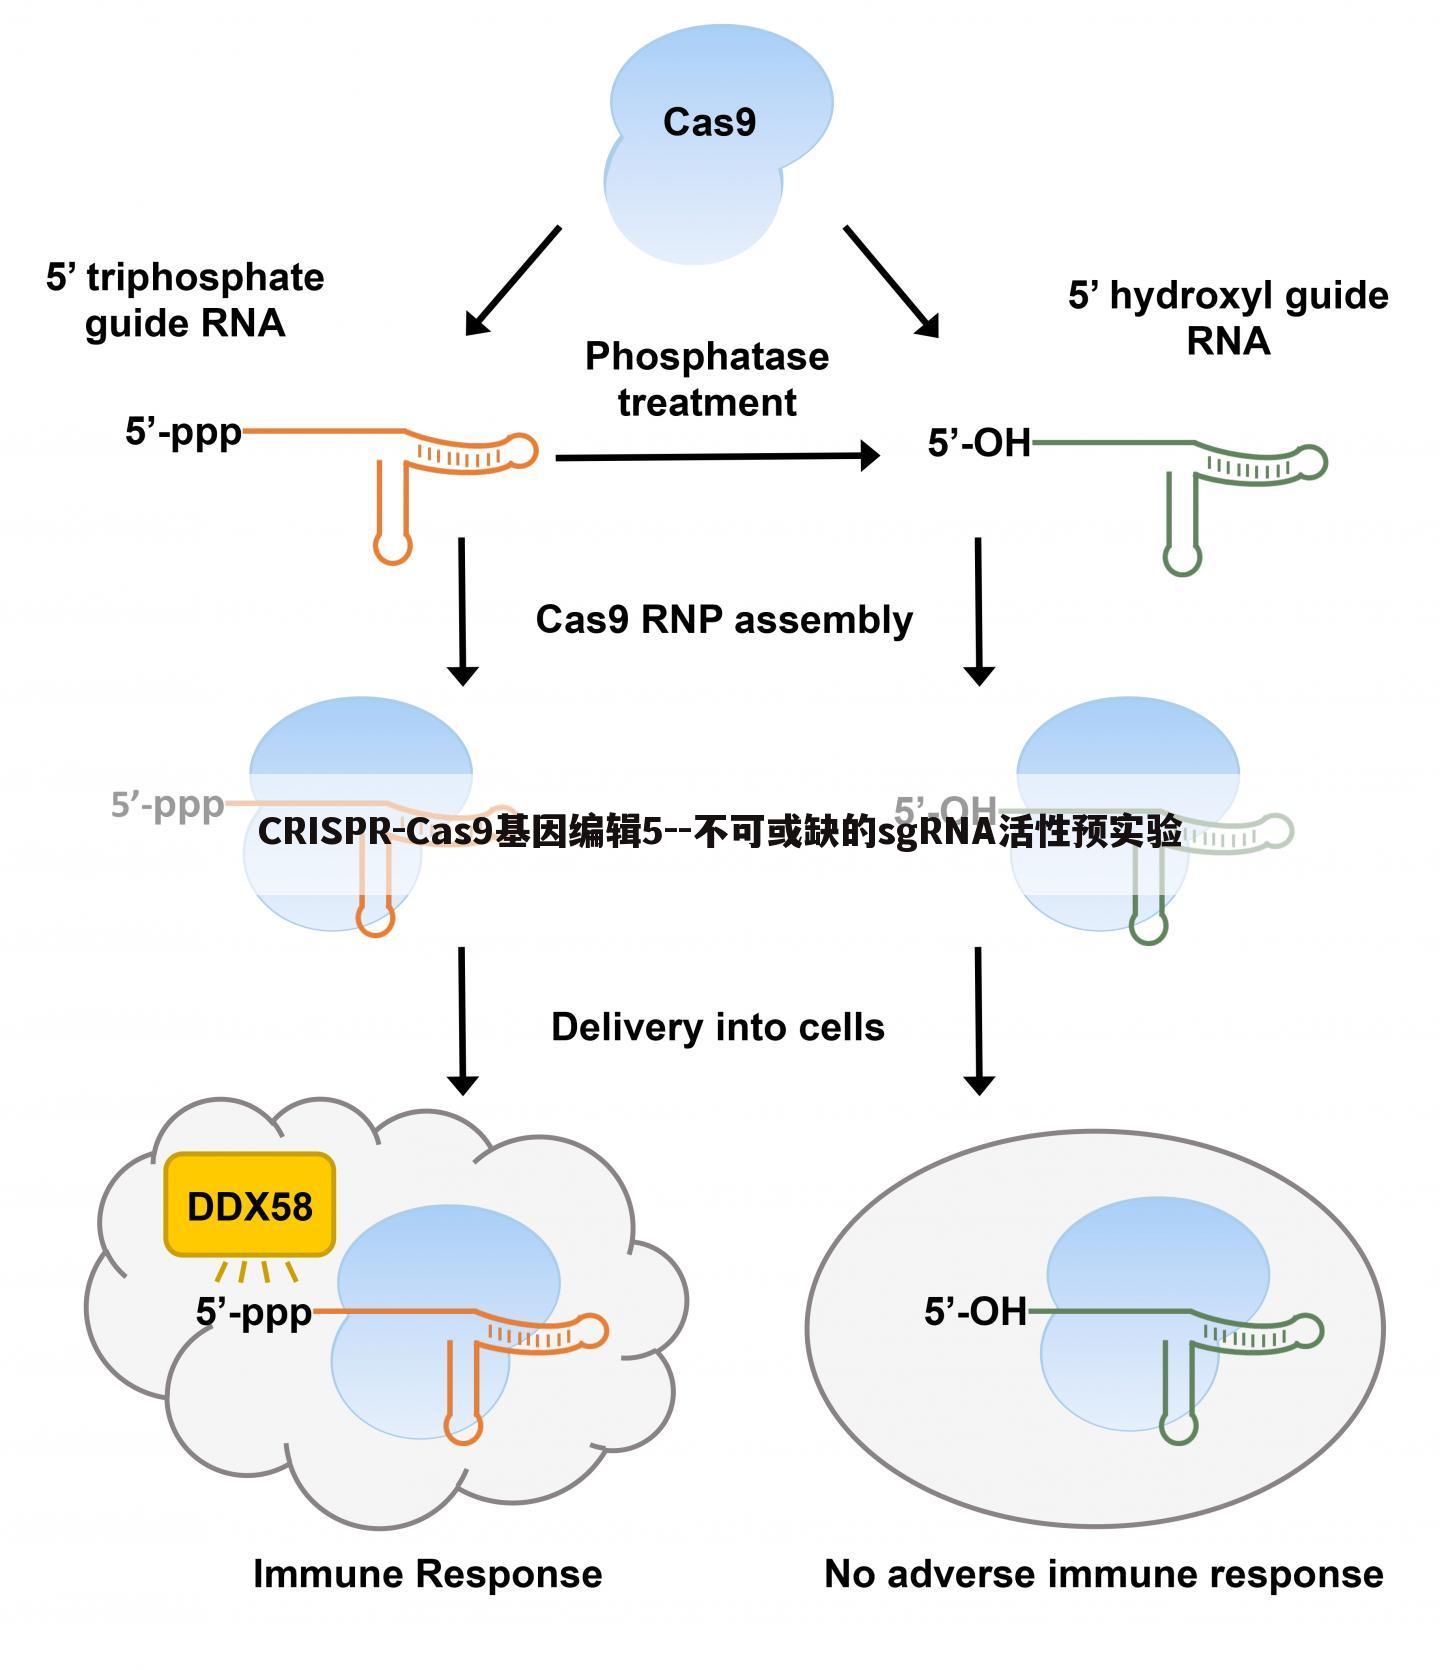
CRISPR-Cas9基因编辑5--不可或缺的sgRNA活性预实验
本文贡献者:【≈倾城般的骚年】, 疑问关键字:sgrna设计网站, 下面就让重庆云诚科技小编为你解答,希望本文能找到您要的答案!
答大家都知道CRISPR-Cas9有脱靶效应,并且每个sgRNA的效率都不一样的,因此在做正式实验之前,我们要验证sgRNA的效率,之后优中选优。还是那句话,同样的目的有很多不同的方案,我了解到的有:
欢迎大家补充,互相交流,提供更方便快捷的方案,由于我们实验室购买试剂盒时间长,相对困难,且sgRNA的切割效率的验证还是活细胞内效率最为准确。经过课题组师兄DZ的优化,一般我们针对一个基因的简单敲除,设计2个sgRNA即可,并且选择方案2进行验证。
接前期推文,我们做了一手漂亮的质粒转染后, 如何确定sgRNA切割活性,这条sgRNA到底还要不要,就看今天了 。
(1)293细胞转染
在转染前一天,将293细胞以单细胞分散状态种至6孔板中,组别设计为: 293未转染组(negative control),293转染组 。转染当天293细胞融合度为30
40%,将2.0
2.5 μg pSpCas9_sgRNA质粒使用lipofectamine 3000按照常规条件转染(具体细节请参照上期文章),72 h内进行下一步实验。
注意事项:由于293细胞贴壁不牢,很容易被吹落,因此在滴加转染试剂的时候要十分轻柔,换液时要更加小心沿壁加入,并且培养基要提前预温。
(2)提取293细胞基因组DNA
这里我们使用的是天根公司的基因组DNA提取试剂盒,严格按照试剂盒要求即可。
(3)使用高保真DNA聚合酶完成PCR实验
一定要使用高保真酶的原因是,T7 EI内切酶的原理是识别突变位点,所以如果使用的DNA聚合酶不够保真,在PCR过程扩增错误,引入突变,则会影响后续结果。 在这里需要提醒的是,任何DNA聚合酶的使用,一定要严格查阅相应说明书,确定实验条件 。我们使用的是NEB公司的Q5高保真DNA聚合酶,根据说明书指示,Q5 DNA聚合酶做的PCR实验,其primer的退火温度和普通我们使用的不一样,需要使用NEB公司的Tm calculator工具计算得出。
(4)胶回收PCR扩增出的目的序列
胶回收的原则就是,量大质优,严格按照说明书操作即可。
(5)T7 Endonuclease I 酶切实验
配置实验反应
按照以下条件annealing
设置酶切反应后,37 ℃孵育15分钟
(6)琼脂糖凝胶电泳,预测分子量大小<1 kb,使用 1.5
2%琼脂糖;分子量大小为1
10 kb大小时,选用1-1.2%
(7)结果分析示例
CRISPR-Cas9基因编辑的直接敲除系列,今天写到这里算是完成了预实验部分。这个时候可以把整个方案的流程放在这里权当总结,并提示之后实验方向方向:
准备工作和预实验要至少得到以下简化的实验结果:
以上就是重庆云诚科技小编解答(≈倾城般的骚年)解答关于“CRISPR-Cas9基因编辑5--不可或缺的sgRNA活性预实验”的答案,接下来继续为你详解投稿用户(离开就别回头)回答“如何提高sgRNA的打靶效率”的一些相关解答,希望能解决你的问题!
如何提高sgRNA的打靶效率
本文贡献者:【离开就别回头】, 疑问关键字:sgrna设计网站, 下面就让重庆云诚科技小编为你解答,希望本文能找到您要的答案!
答为进一步提高CRISPR/Cas9系统的打靶效率,比较共质粒或双质粒表达Cas9内切酶和小向导RNA (sgRNA)的不同载体设计对其打靶效率的影响。方法:将针对AAVS1位点的2个sgRNA序列分别插入表达Cas9的质粒pSpCas9上,再将其构建为Cas9-sgRNA二合一的共质粒以及独立表达sgRNA和Cas9的双质粒系统;质粒转染293T细胞后,用T7E1酶切方法检测打靶效率。结果:不经过变性退火的PCR片段也能直接进行T7E1酶切;Cas9-sgRNA共质粒系统的打靶效率显著高于双质粒系统。
以上就是重庆云诚科技小编解答贡献者:(离开就别回头)分析的关于“如何提高sgRNA的打靶效率”的问题了,不知是否已经解决你的问题?如果没有,下一篇内容可能是你想要的答案,下面继续解疑下文用户【信我可好。】回答的“protocol-使用CRISPR-Cas9系统进行基因编辑(二)”的一些相关问题做出分析与解答,如果能找到你的答案,可以关注本站。
protocol-使用CRISPR-Cas9系统进行基因编辑(二)
本文贡献者:【信我可好。】, 疑问关键字:sgrna设计网站, 下面就让重庆云诚科技小编为你解答,希望本文能找到您要的答案!
答
接上文,还是这篇文章。但是上篇文章只是简单的介绍了一下CRISPR-Cas9系统,以及它的一些原理和应用介绍。今天还是基于上次的结构来进行补充。会保留上篇文章中的一些关键信息,以帮助理解。
文章结构简单整理如下:
和ZFN,TALEN一样,CRISPR-Cas也是通过激活DSB的模式来达到基因标记的目的。
CRISPR RNA (crRNA) array,编码gRNA,再加上tracrRNA,则可达到定位+编辑的功能 gRNA用于引导,tracrRNA用于结合靶点。所以,人们就把crRNA和tracrRNA合在一起,成为了single-guide RNA,即sgRNA,而通过修改tracrRNA的序列,在理论上可以on-target任何目的靶点。
Cas9 offers several potential advantages over ZFNs and TALENs , including the ease of customization, higher targeting efficiency and the ability to facilitate multiplex genome editing. As custom ZFNs are often difficult to engineer, we will primarily compare Cas9 with TALEN.
Cas9只需要重新购买一对oligos 20-nt gRNA即可,可是TALEM却需要重新设计新的TALEN.
WT S. pyogenes Cas9 (SpCas9) is known to make a blunt cut between the 17th and 18th bases in the target sequence (3 bp 5′ of the PAM). Mutating catalytic residues in either the RuvC or the HNH nuclease domain of SpCas9 converts the enzyme into a DNA nicking enzyme. In contrast, TALENs cleave nonspecifically in the 12–24-bp linker between the pair of TALEN monomer-binding sites.
Cas9可以同时对对个目的基因进行编辑,只要联合使用相应的sgRNA即可。
我放英文原文的原因是:要么这里很重要,担心自己的理解不能完全阐明;要么就是,这里不是那么重要,放出来看看就行。
Cas要求唯一的PAM存在3′ of the 20-bp target sequence,每个同源的Cas9有唯一的PAM序列,而这个情况在人类中却不是那么严格,常常每8-12个bp就能找到一个。
另外很重要的就是脱靶效应。
PAM必须紧跟在20-nt对应的靶向基因的下游,结合前面所说,降低脱靶效应也至关重要。
(i) the 5′-NGG PAM for S. pyogenes Cas9 and (ii) the minimization of off-target activity
We provide an online CRISPR Design Tool ( ) that takes a genomic sequence of interest and identifies suitable target sites. To experimentally assess off-target genomic modifications for each sgRNA, we also provide computationally predicted off-target sites (for a detailed discussion, see Box 1)
为了解决不足之处,张老师课题组提供了在线设计sgRNA的工具,并且也提供了关于脱靶位点的计算方法以及增加编辑效率的alternative strategy(using the D10A nickase mutant of Cas9 (Cas9n) along with a pair of sgRNAs)---该部分内容比较多,感兴趣可回原文查看
CRISPR设计工具提供了所需的所有寡核苷酸和引物的序列(i)制备sgRNA结构,(ii)分析目标修饰效率,(iii)评估潜在靶外位点的切割。值得注意的是,由于表达sgRNA的U6 RNA聚合酶III启动子更倾向于将鸟嘌呤(G)核苷酸作为其转录本的第一个碱基,因此在sgRNA的5 '端附加了一个额外的G,而20-nt引导序列并不以G开头(图4 b, c)。在极少数情况下,某些sgRNA可能由于未知的原因而无法工作;因此,我们建议为每个位点设计至少两个sgRNA,并在预期的细胞类型中测试它们的效率。
Isolation of clonal cell lines with specific modifications is often desired. This can be achieved after transfection by isolating single cells through either FACS (Steps 54–65) or serial dilutions (Steps 66–70) , followed by an expansion period to establish a new clonal cell line. It is worth noting that cell types can vary substantially in their responses to single-cell isolation, and literature specific to the cell type of interest should be consulted.
使用流式分离或者连续稀释法得到单克隆。
(1)SURVEYOR nuclease assay.
(2)Plasmid- or ssODN-mediated HDR.
(3)Detection of indels or HDR by sequencing
感谢师兄DZ
上文就是重庆云诚科技小编分享贡献者:(信我可好。)解答的关于“protocol-使用CRISPR-Cas9系统进行基因编辑(二)”的问题了,不知是否已经解决你的问题?如果没有,下一篇内容可能是你想要的答案,下面继续叙述下文用户【蹉跎岁月】解答的“CRISPR简述”的一些相关疑点做出分析与解答,如果能找到你的答案,可以关注本站。
CRISPR简述
本文贡献者:【蹉跎岁月】, 疑问关键字:sgrna设计网站, 下面就让重庆云诚科技小编为你解答,希望本文能找到您要的答案!
答(1)锌指核酸内切酶(zinc finger endonuclease,ZFN):是第一代人工核酸内切酶
(2)类转录激活因子效应物核酸酶(transcription activator-like effector nuclease,TALEN):第二代人工核酸酶。
(3)Clustered regularly interspaced short palindromic repeats (CRISPR)/CRISPR-associated (Cas)9 第三代人工核酸内切酶(前两代就是ZFN和TAILEN)。
(4)人工核酸内切酶(engineered endonuclease,EEN)
Jennifer Doudna和Emmanuelle Charpentier重在CRISPR/Cas9技术的基础研究,而张峰和George Church在各种人类细胞中的应用方面贡献较多,其中张锋对CRISPR/Cas9技术方面的改进也有突出的贡献。
Clustered Regularly Interspaced Short Palindromic Repeats(CRISPR) :是在细菌中发现的有规律成簇又带间隔的短回文序列,可以帮助细菌抵抗噬菌体的入侵,是细菌针对噬菌体的获得性免疫。 CRISPR-Cas系统是原核生物的一种天然免疫系统 。某些细菌在遭到病毒入侵后,能够把病毒基因的一小段存储到自身的 DNA 里一个称为 CRISPR 的存储空间。当再次遇到病毒入侵时,细菌能够根据存写的片段识别病毒,将病毒的DNA切断而使之失效。
CRISPR locus是由几个原件构成,如下图:一开始是个反向转录的RNA,是特异的非编码RNA,可以和重复序列部分互补(trancrRNA,橙色矩形),后面是各种cas基因(箭头表示),接着是CRISPR排列(棕色的菱形是重复序列,彩色的是间隔)。而这些间隔序列是细菌从噬菌体DNA中获得的遗传序列:当噬菌体感染细菌,细菌激活相关的cas基因——Cas1,Cas2,和Csn2,将其中新的间隔序列整合到自身的CRISPR arry中。一旦获得新的间隔序列以后,新的spacer就会出现在pre-crRNA中,此时tracrRNA与不同的SPACER互补,在RNaseIII的作用下,产生crRNA,进一步在其他未知的核酸酶的作用,剪切crRNA的5'端, 使得引导序列长为20nt 。如果噬菌体注入DNA,那么这个免疫系统将被激活,来干扰剪切噬菌体DNA,起到获得性免疫作用。
经过广谱检测,人们发现了三种主要的CRISPR系统,它们由CRISPR-associated (Cas)基因、非编码rna和一组独特的重复元素(直接重复)组成,而这些重复序列则由来自外源性DNA靶点(即原间隔体)的短可变序列直接间隔开来;重复序列+间隔序列=CRISPR RNA (crRNA) array。在有DNA靶点的情况下,每一个间隔序列都有一个前间区序列邻近基序(PAM——Ⅱ型系统的PAM基序为 5-NGG-3 )。
II型CRISPR系统是最具特征的系统之一,它由核酸酶Cas9、编码引导rna的crRNA阵列和有助于将crRNA阵列加工成离散单元的所需辅助反式激活crRNA (tracrRNA)组成
S. pyogenes亚型II-A Cas9(1368个氨基酸)是基因组工程中研究最多、使用最多的Cas9版本。其优势是:氨基酸序列相对较小,方便操作,且只是需要一个DNA内切酶Cas9来对与sgRNA20个互补碱基的带有PAM结构的DNA进行剪切。剪切后是DNA产生平末端的DSB(双链断裂),然后在进行非同源的末端连接(NHEJ)过程中,容易随机插入或者删除或者替换。或者进行高保真的同源定向修复(HDR),修复DNA。
CRISPR RNA (crRNA) array,编码gRNA,再加上tracrRNA,则可达到定位+编辑的功能 ,gRNA用于引导,tracrRNA用于结合靶点。把crRNA和tracrRNA合在一起,成为了single-guide RNA,即 sgRNA ,而通过修改tracrRNA的序列,在理论上可以on-target任何目的靶点。
这项技术主要由sgRNA定位到一个基因位点上,由Cas9酶在该位点进行DNA双链的切割,切割导致DNA修复通路的激活,使得其它的碱基加入进切割的位点,造成frameshift突变,使得基因无法被表达成功能性蛋白。
Cas9造成基因不被表达是由NHEJ修复通路引起,然而,Cas9造成的DSB并不一定会引发NHEJ,因为DSB end的碱基并没有任何损坏,这种end也叫blunt end,很容易再次粘连在一起,此时可以通过外源性同源重组引入Gene drive,或者说blunt end再次粘连在一起,sgRNA也会会再次识别这段序列,然后Cas9会再次切,反复下去,直到发生了由NHEJ引导出的突变,sgRNA才不会识别这段序列。
CRISPR基因序列主要由前导序列(leader)、重复序列(repeat)和间隔序列(spacer)构成 。
①前导序列 :富含AT碱基,位于CRISPR基因上游, 被认为是CRISPR序列的启动子 。
②重复序列 :长度约20–50 bp碱基且包含5–7 bp回文序列,转录产物可以形成发卡结构, 稳定RNA的整体二级结构 。
③间隔序列 : 是被细菌俘获的外源DNA序列 。这就相当于细菌免疫系统的“黑名单”,当这些外源遗传物质再次入侵时,CRISPR/Cas系统就会予以精确打击。
化脓性链球菌
Cas9(以下称为SpyCas9)是大型(1,368个氨基酸)多结构域和多功能DNA核酸内切酶。它通过其两个不同的核酸酶结构域在PAM上游剪接dsDNA 3 bp:一个HNH样核酸酶结构域,其切割与指导RNA序列互补的DNA链(靶链),以及一个RuvC样核酸酶结构域,其负责切割DNA。与互补链相反的链(非目标链)。除了在CRISPR干扰中起关键作用外,Cas9还参与crRNA成熟和间隔区获取。
先简单介绍一下张锋实验室的CRISPR DOUBLE NICKASE
和普通Cas9不同的是,Cas9n (Cas9 Nickase)上有一个D10A的氨基酸突变,这个突变使得Cas9不再导致DNA双链断裂和NHEJ修复(一种会引来突变的修复),而是会引起单链断裂和BER修复(一种不会引起突变的修复),如下图
利用Cas9 nickase只能进行单链剪切的特性,张峰团队想到把两个Cas9 nickase共同作用在一个基因位点上,使其形成双链断裂(DSB),而非特异性结合则不会引起DSB,这样就降低了非特异性突变。
Cas9可以对靶基因组进行剪切,形成DNA的双链断裂。在通常情况下,细胞会采用高效的 非同源末端连接 方式(NHEJ)对断裂的DNA进行修复。但是,在修复过程中通常会发生碱基插入或缺失的错配现象,造成移码突变,( 移码突变 :是指DNA分子由于某位点碱基的缺失或插入,引起阅读框架变化,造成下游的一系列密码改变,使原来编码某种肽链的基因变成编码另一种完全不同的肽链序列。)使靶标基因失去功能,从而实现基因敲除。为了提高CRISPR系统的特异性,可将Cas9的一个结构域进行突变,形成只能对DNA单链进行切割造成DNA缺口的Cas9 nickase核酸酶。因此想要形成双链断裂的效果可以设计两条sgRNA序列,分别靶向DNA互补的两条链,这样两条sgRNA特异性的结合靶标序列,即可形成DNA断裂,并在修复过程中通过移码突变实现基因敲除
当DNA双链断裂后,如果有DNA修复模板进入到细胞中,基因组断裂部分会依据修复模板进行 同源重组修复 (HDR),从而实现基因敲入。修复模板由需要导入的目标基因和靶序列上下游的同源性序列(同源臂)组成,同源臂的长度和位置由编辑序列的大小决定。DNA修复模板可以是线性/双链脱氧核苷酸链,也可以是双链DNA质粒。HDR修复模式在细胞中发生率较低,通常小于10%。为了增加基因敲入的成功率,目前有很多科学家致力于提高HDR效率,将编辑的细胞同步至HDR最活跃的细胞分裂时期,促进修复方式以HDR进行;或者利用化学方法抑制基因进行NHEJ,提高HDR的效率
Cas9的特点是能够自主结合和切割目的基因,通过点突变的方式使Cas9的两个结构域RuvC-和HNH-失去活性,形成的dCas9只能在sgRNA的介导下结合靶基因,而不具备剪切DNA的功能。因此,将dCas9结合到基因的转录起始位点,可以阻断转录的开始,从而抑制基因表达;将dCas9结合到基因的启动子区域也可以结合转录抑制/活化物,使下游靶基因转录受到抑制或激活。因此dCas9与Cas9、Cas9 nickase的不同之处在于,dCas9造成的激活或者抑制是可逆的,并不会对基因组DNA造成永久性的改变。
将多个sgRNA质粒转入到细胞中,可同时对多个基因进行编辑,具有基因组功能筛选作用。多重编辑的应用包括:使用双Cas9nickases提高基因敲除的准确率、大范围的基因组缺失及同时编辑不同的基因。通常情况下,一个质粒上可以构建2~7个不同的sgRNA进行多重CRISPR基因编辑。
利用CRISPR-Cas9进行基因编辑可以产生大量的基因突变细胞,因此利用这些突变细胞可以确认表型的变化是否是由基因或者遗传因素导致的。基因组筛选的传统方法是shRNA技术,但是shRNA有其局限性:具有很高的脱靶效应以及无法抑制全部基因而形成假阴性的结果。CRISRP-Cas9系统的基因组筛选功能具有高特异性和不可逆性的优势,在基因组筛选中得到了广泛的应用。目前CRISPR的基因组筛选功能应用于筛选对表型有调节作用的相关基因,如对化疗药物或者毒素产生抑制的基因、影响肿瘤迁移的基因以及构建病毒筛选文库对潜在基因进行大范围筛选等。
今天的内容先分享到这里了,读完本文《「sgrna设计网站」为什么sgrna设计要加G》之后,是否是您想找的答案呢?想要了解更多,敬请关注www.cqycseo.com,您的关注是给小编最大的鼓励。
推荐文章:
本文由网上采集发布,不代表我们立场,转载联系作者并注明出处:https://www.cqycseo.com/kangadmin/makehtml_archives_action.php?endid=0&startid=-1&typeid=15&totalnum=6115&startdd=2340&pagesize=20&seltime=0&sstime=1679321406&stime=&etime=&uptype=&mkvalue=0&isremote=0&serviterm=

